同步与协同动力学
研究耦合振荡器如何在网络上达成同步,网络拓扑怎样决定同步阈值与稳定性,以及同步异常与疾病的关系。
在网络上的传播与免疫中,节点状态是离散的(易感、感染、移除)。同步研究另一类网络动力学:每个节点本身是一个振荡器,有自己的节律,通过连接相互影响。当耦合足够强时,许多振荡器会“步调一致”,这就是同步(synchronization)。
心脏窦房结的起搏、视交叉上核产生的昼夜节律、大脑的 α/β/γ 节律都依赖同步;癫痫与帕金森病则与同步的异常有关。本专题围绕以下问题展开:
- 怎样用数学描述“同步”,怎样度量同步程度(同步现象与类型、Kuramoto 模型与序参量);
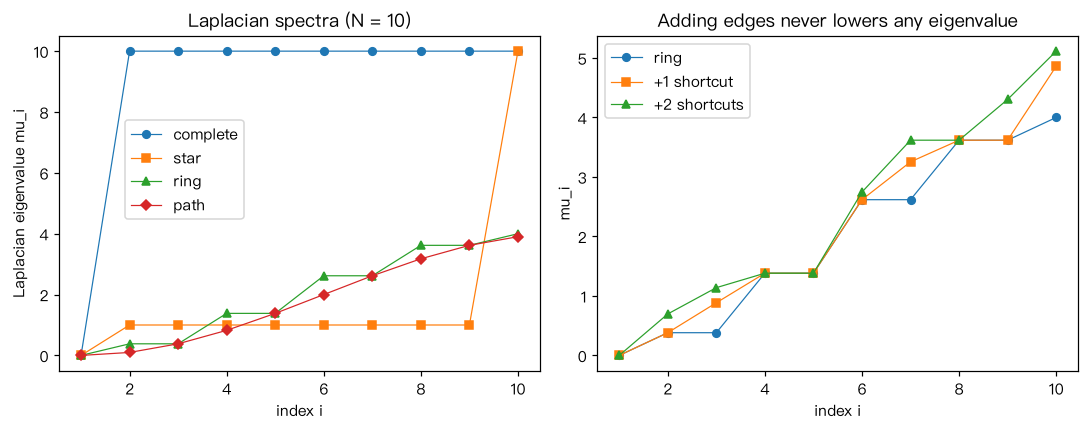
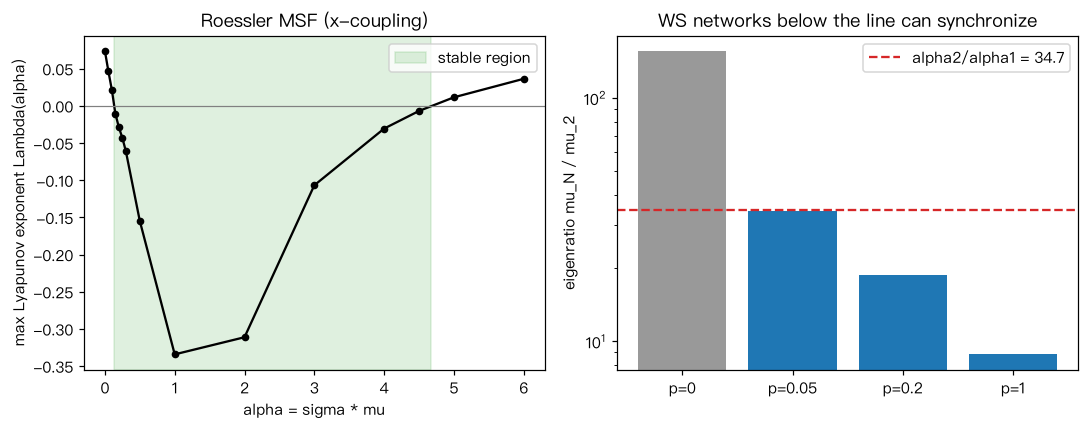
- 网络结构怎样决定同步何时开始、能否稳定:同步阈值中再次出现 (网络拓扑与同步阈值),而相同振荡器的同步稳定性归结为拉普拉斯矩阵的谱(拉普拉斯谱与代数连通度、主稳定函数与可同步性);
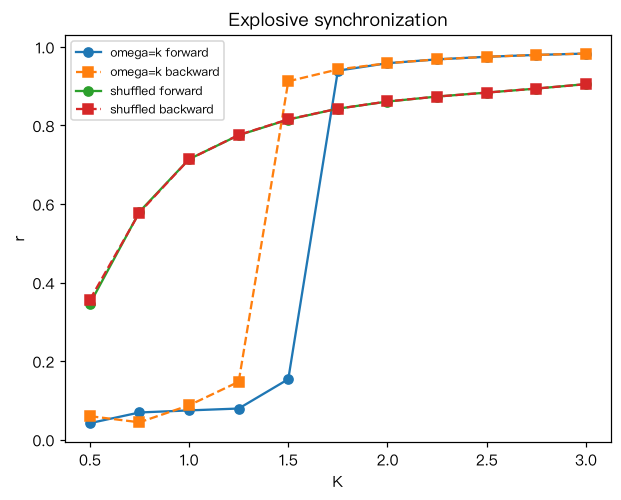
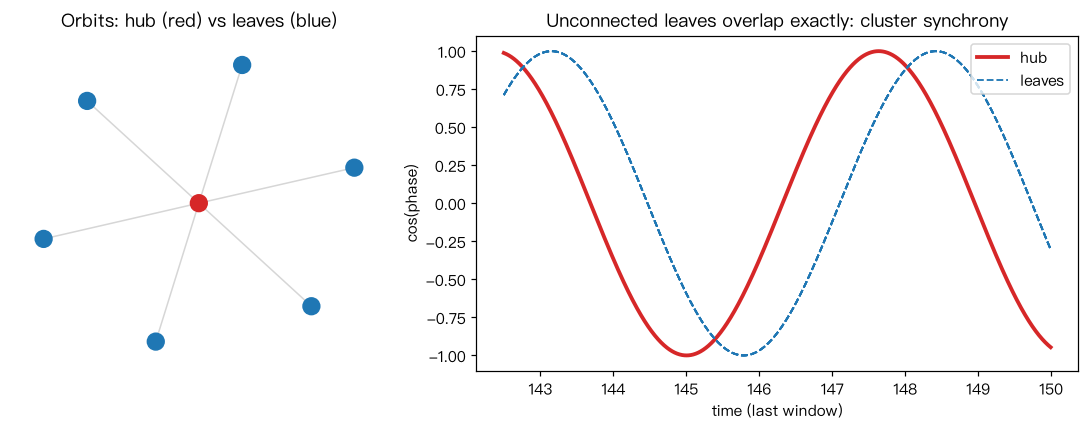
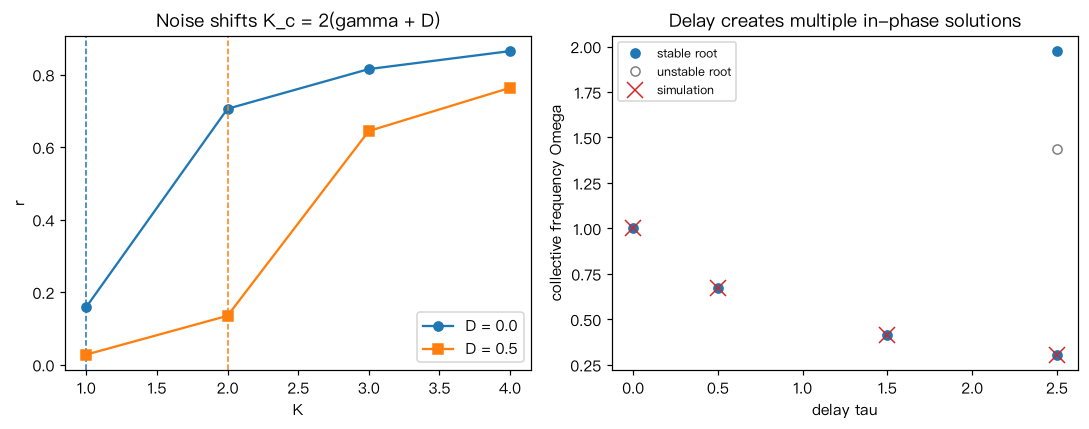
- 同步的“非常规”形态:按模块分层出现(分层同步)、不连续地突然出现(爆发式同步)、只在部分节点出现(簇同步与奇异态),以及时滞与噪声的作用(时滞与噪声);
- 同步的线性简化——共识动力学——与代数连通度的关系(共识动力学);
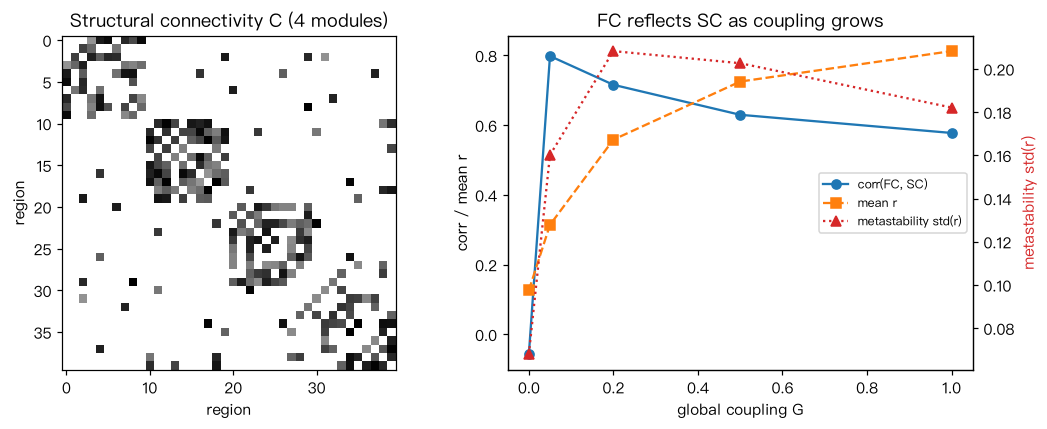
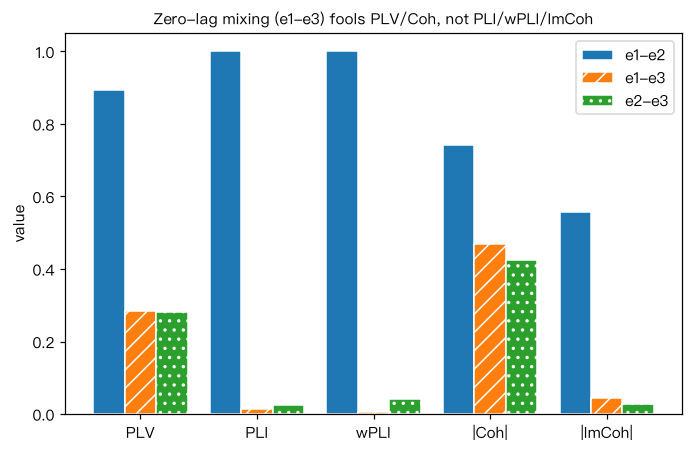
- 怎样把这些理论用于大脑:在结构连接组上搭建全脑动力学模型(神经质量模型与全脑模型),以及怎样从 EEG/MEG 数据估计相位同步而不被容积传导误导(从实测信号估计同步)。
本专题的谱方法与线性化思路是网络可控性与稳定性中动力学稳定性分析的基础;从实测信号估计同步的方法则直接通向脑连接组:结构与功能连接和动态功能连接与多层脑网络中的功能脑网络。全部示例代码见计算实现。
Contents知识页面
VIDEO讲解视频
文字稿
大家好,这一期我们讨论网络动力学的第二个主题,同步。萤火虫成群一起闪光,心脏里的起搏细胞一起放电,这些都是同步。早在1665年,惠更斯就发现挂在同一根横梁上的两只摆钟会自发同步。今天我们要弄清楚,许多节奏不同的个体,怎样通过网络变得步调一致。
第一,怎样用一个数字来度量一群振荡器同步了多少。第二,耦合要多强,同步才会出现。第三,网络结构,比如枢纽、捷径和社团,怎样影响同步。第四,大脑和心脏里的同步,与疾病有什么关系。
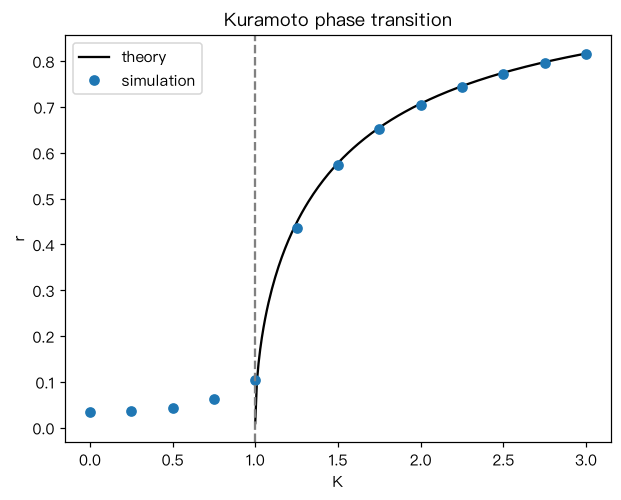
1975年,Kuramoto 提出了一个极简的模型,每个振荡器只用一个相位来描述。每个振荡器有自己的固有频率,同时被其他振荡器拉向它们的相位。落后的被拉快一点,领先的被拉慢一点,拉力的大小就是耦合强度。怎样度量同步呢?把每个相位看成单位圆上的一个点,求这些点的质心。质心到圆心的距离叫序参量,相位散开时接近0,完全同步时等于1。
现在我们逐渐增大耦合强度,看看圆上的振荡器会发生什么。耦合很弱的时候,大家各转各的,序参量在0附近小幅波动。耦合超过某个临界值,一部分振荡器突然聚到一起,形成同步簇。右边的序参量曲线随之迅速上升,这就是同步相变。注意,固有频率特别快或特别慢的振荡器,仍然在圆上独自漂移。理论告诉我们,临界耦合与频率分布在中心处的密度成反比,频率越分散越难同步。
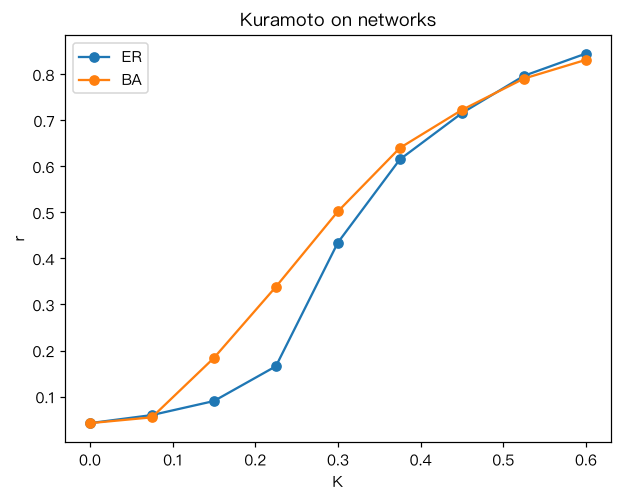
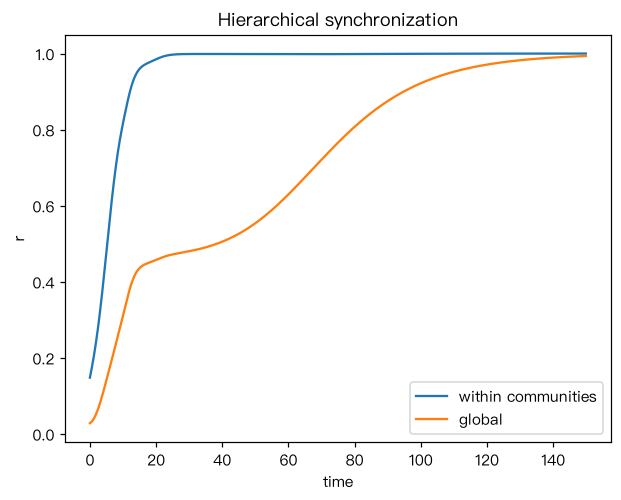
把振荡器放到网络上,临界耦合等于一个常数乘以平均度与二阶矩之比。大家应该觉得眼熟,这和传播专题里流行病阈值的形式完全一样。度越不均匀,枢纽越先同步,整个网络越早开始出现部分同步。但如果关心相同振荡器能否稳定地完全同步,要看拉普拉斯矩阵的特征值比。特征值比越小越容易同步,小世界的少量捷径能让它大幅下降。而度很不均匀的网络,特征值比往往偏大,反而更难完全同步。在社团结构明显的网络里,同步分层出现,先社团内部,再全局。
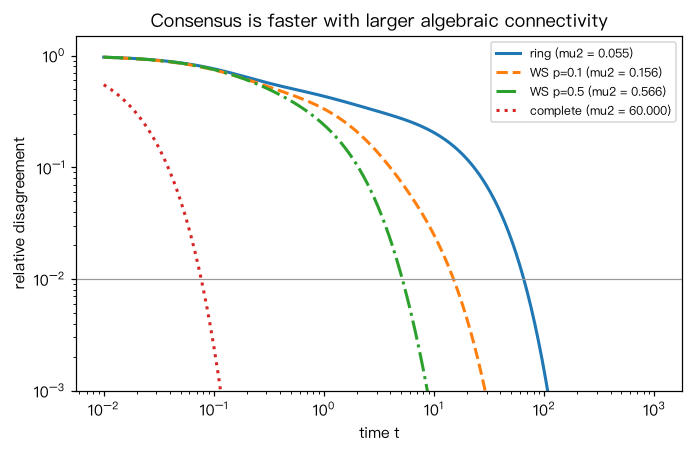
如果每个节点只有一个数值,并不断向邻居的数值看齐,就得到共识动力学。在连通的无向网络上,大家最终会达到初始值的平均。收敛有多快,由拉普拉斯矩阵的第二小特征值决定,也叫代数连通度。
心脏的节律来自窦房结中许多起搏细胞的同步放电。生物钟依靠视交叉上核中大量神经元的同步,网络耦合让节律更加稳健。帕金森病患者基底节环路中,β 频段的同步异常增强,与运动迟缓有关。癫痫常被说成过度同步,但颅内记录显示,发作过程中的同步变化相当复杂。所以对大脑来说,同步不是越强越好,关键是分离与整合的平衡。
好,最后用四句话把这一期的要点小结一下。序参量是相位在单位圆上的质心长度,用来度量同步程度。耦合超过临界值,系统从无序进入部分同步,这是一种相变。度异质性让同步更早开始,捷径让同步更稳定,社团带来分层同步。在生物系统中,同步过强或过弱都可能意味着疾病。
请打开交互演示,亲手拖动耦合强度,观察序参量的跳变。然后在代码示例里比较随机网络和无标度网络的同步起点。下一期我们讨论怎样控制一个网络,以及网络在攻击下有多稳定。
INTERACTIVE交互可视化
CODE计算实现
11 个完整可运行的 Python 示例,每个都给出代码、输出图和解读;可在浏览器中直接运行,或下载 Jupyter Notebook · Python 脚本。
Papers论文精读
“小世界”网络的集体动力学
Collective dynamics of 'small-world' networks
Watts DJ, Strogatz SH
用随机重连在规则网格与随机图间插值,发现少量捷径即可使网络兼具高聚类与短路径,并在真实网络中验证。
复杂网络中的同步
Synchronization in complex networks
Arenas A, Díaz-Guilera A, Kurths J, Moreno Y, Zhou C
系统综述网络拓扑如何影响同步:Kuramoto 模型的同步起点与路径、主稳定函数与可同步性及应用。
References核心文献
Strogatz 2000:From Kuramoto to Crawford(Physica D)
- 背景:Kuramoto 模型提出后 25 年,其稳定性分析一直存在难点。Strogatz 以讲故事的方式回顾了这一问题的来龙去脉。
- 核心内容:平均场自洽推导 ;锁定与漂移振荡器的划分;不相干态在 时为何是“中性稳定”的;Crawford 等人的工作如何解释临界点附近的标度律。
- 阅读要点:先读第 1–4 节,跟着推导一遍自洽方程。重点理解“漂移振荡器为何对序参量没有净贡献”。
- 延伸思考:如果 是双峰分布(两群振荡器频率不同),预计会出现什么样的同步行为?
DOI:10.1016/S0167-2789(00)00094-4
Arenas 等 2008:Synchronization in complex networks(Physics Reports)
- 背景:2000 年后,网络科学与同步研究交汇,产生了大量结果。这篇综述是该领域的标准参考。
- 核心内容:网络 Kuramoto 模型的平均场理论;主稳定函数与特征值比;小世界、无标度、加权与模块化网络上的同步;同步与社团发现;在生物、通信等系统中的应用。
- 阅读要点:篇幅很长,建议先读引言和第 2–4 章的结构,按需深入。注意区分“相同振荡器的完全同步”和“非相同振荡器的相位同步”这两条研究线。
- 延伸思考:如果想通过增加少量边来提高一个网络的可同步性,按 MSF 框架应该优化哪个量?这对脑网络的“长程连接”有何启示?
DOI:10.1016/j.physrep.2008.09.002;精读:Arenas 2008
Pecora 与 Carroll 1998:Master stability functions for synchronized coupled systems(PRL)
- 背景:混沌系统可以同步(Pecora 与 Carroll 1990 年代初的工作),但不同网络、不同耦合方式下同步是否稳定,需要逐一计算。
- 核心内容:在同步态附近按拉普拉斯特征向量把扰动解耦,提出只依赖节点动力学和耦合方式的主稳定函数,把网络结构的作用归结为 是否落在稳定区。
- 阅读要点:论文很短,重点看分块对角化那一步和对 Rössler 振子稳定区的讨论,对照数学推导与算法 C 节。
- 延伸思考:如果耦合通过 分量而不是 分量,稳定区会怎样变化?对神经元模型,“通过哪个变量耦合”对应什么生理机制?
DOI:10.1103/PhysRevLett.80.2109
Rodrigues 等 2016:The Kuramoto model in complex networks(Physics Reports)
- 背景:Arenas 等 2008 之后,网络 Kuramoto 模型的研究迅速扩展:爆发式同步、带惯性的模型(电网)、Ott–Antonsen 约化、多层网络等。
- 核心内容:网络上同步起点的各种近似、同步路径、度–频率关联与爆发式同步、噪声与惯性的影响、在工程(电网)、神经科学与地球科学中的应用及开放问题。
- 阅读要点:可作为工具书查阅,先读引言和网络阈值部分,再按需选读爆发式同步与神经科学应用章节。
DOI:10.1016/j.physrep.2015.10.008
Breakspear 2017:Dynamic models of large-scale brain activity(Nature Neuroscience)
- 背景:脑成像产生了大量结构与功能连接数据,需要动力学模型把二者联系起来。
- 核心内容:从神经质量模型、神经场模型到全脑网络模型的建模层级;多稳态、亚稳态、临界性等动力学概念;模型与 fMRI、EEG/MEG 数据的对接方式及其局限。
- 阅读要点:重点理解模型层级的划分与每一层的假设,对照神经质量模型与全脑模型。
- 延伸思考:如果两个不同的全脑模型拟合同一份 FC 数据同样好,还能用什么数据或实验区分它们?
DOI:10.1038/nn.4497
Uhlhaas 与 Singer 2006:Neural synchrony in brain disorders(Neuron)
- 背景:神经振荡与同步被认为是大脑整合分布式信息的机制之一,那么疾病是否表现为同步异常?
- 核心内容:综述精神分裂症、癫痫、孤独症、阿尔茨海默病、帕金森病等疾病中神经同步的改变,提出同步异常可能是多种疾病的共同病理生理基础。
- 阅读要点:区分“同步增强”与“同步减弱”对应的疾病;关注各研究使用的同步指标和记录方式(EEG、MEG、颅内记录),想一想哪些结论可能受测量方法影响。
- 延伸思考:如果用 Kuramoto 模型模拟“病理性过度同步”,应调整哪个参数?治疗(如深部脑刺激)在模型中可以对应什么操作?
DOI:10.1016/j.neuron.2006.09.020
其他引用文献
综述与专著
- Boccaletti S, Latora V, Moreno Y, Chavez M, Hwang D-U. Complex networks: Structure and dynamics. Physics Reports 2006. 10.1016/j.physrep.2005.10.009
- Acebrón JA 等. The Kuramoto model: A simple paradigm for synchronization phenomena. Rev Mod Phys 2005. 10.1103/RevModPhys.77.137
- Pikovsky A, Rosenblum M, Kurths J. Synchronization: A Universal Concept in Nonlinear Sciences. Cambridge University Press 2001. 10.1017/CBO9780511755743
- Boccaletti S 等. Explosive transitions in complex networks’ structure and dynamics: Percolation and synchronization. Physics Reports 2016. 10.1016/j.physrep.2016.10.004
- Panaggio MJ, Abrams DM. Chimera states: coexistence of coherence and incoherence in networks of coupled oscillators. Nonlinearity 2015. 10.1088/0951-7715/28/3/R67
- Glass L. Synchronization and rhythmic processes in physiology. Nature 2001. 10.1038/35065745
- Olfati-Saber R, Fax JA, Murray RM. Consensus and cooperation in networked multi-agent systems. Proc IEEE 2007. 10.1109/JPROC.2006.887293
理论
- Fiedler M. Algebraic connectivity of graphs. Czechoslovak Math J 1973. 10.21136/CMJ.1973.101168
- Ichinomiya T. Frequency synchronization in a random oscillator network. PRE 2004. 10.1103/PhysRevE.70.026116
- Restrepo JG, Ott E, Hunt BR. Onset of synchronization in large networks of coupled oscillators. PRE 2005. 10.1103/PhysRevE.71.036151
- Barahona M, Pecora LM. Synchronization in small-world systems. PRL 2002. 10.1103/PhysRevLett.89.054101
- Nishikawa T 等. Heterogeneity in oscillator networks: Are smaller worlds easier to synchronize? PRL 2003. 10.1103/PhysRevLett.91.014101
- Arenas A, Díaz-Guilera A, Pérez-Vicente CJ. Synchronization reveals topological scales in complex networks. PRL 2006. 10.1103/PhysRevLett.96.114102
- Gómez-Gardeñes J, Gómez S, Arenas A, Moreno Y. Explosive synchronization transitions in scale-free networks. PRL 2011. 10.1103/PhysRevLett.106.128701
- Abrams DM, Strogatz SH. Chimera states for coupled oscillators. PRL 2004. 10.1103/PhysRevLett.93.174102
- Kuramoto Y, Battogtokh D. Coexistence of coherence and incoherence in nonlocally coupled phase oscillators. Nonlinear Phenomena in Complex Systems 2002.
- Pecora LM 等. Cluster synchronization and isolated desynchronization in complex networks with symmetries. Nat Commun 2014. 10.1038/ncomms5079
- Sorrentino F 等. Complete characterization of the stability of cluster synchronization in complex dynamical networks. Sci Adv 2016. 10.1126/sciadv.1501737
- Nicosia V 等. Remote synchronization reveals network symmetries and functional modules. PRL 2013. 10.1103/PhysRevLett.110.174102
- Yeung MKS, Strogatz SH. Time delay in the Kuramoto model of coupled oscillators. PRL 1999. 10.1103/PhysRevLett.82.648
- Sakaguchi H. Cooperative phenomena in coupled oscillator systems under external fields. Prog Theor Phys 1988. 10.1143/PTP.79.39
- Strogatz SH, Mirollo RE. Stability of incoherence in a population of coupled oscillators. J Stat Phys 1991. 10.1007/BF01029202
- Ott E, Antonsen TM. Low dimensional behavior of large systems of globally coupled oscillators. Chaos 2008. 10.1063/1.2930766
- Mirollo RE, Strogatz SH. Synchronization of pulse-coupled biological oscillators. SIAM J Appl Math 1990. 10.1137/0150098
脑动力学模型
- Wilson HR, Cowan JD. Excitatory and inhibitory interactions in localized populations of model neurons. Biophys J 1972. 10.1016/S0006-3495(72)86068-5
- Honey CJ 等. Predicting human resting-state functional connectivity from structural connectivity. PNAS 2009. 10.1073/pnas.0811168106
- Cabral J, Hugues E, Sporns O, Deco G. Role of local network oscillations in resting-state functional connectivity. NeuroImage 2011. 10.1016/j.neuroimage.2011.04.010
- Deco G 等. The dynamics of resting fluctuations in the brain: metastability and its dynamical cortical core. Sci Rep 2017. 10.1038/s41598-017-03073-5
- Sanz Leon P 等. The Virtual Brain: a simulator of primate brain network dynamics. Front Neuroinform 2013. 10.3389/fninf.2013.00010
- Shanahan M. Metastable chimera states in community-structured oscillator networks. Chaos 2010. 10.1063/1.3305451
- Kim M 等. Functional and topological conditions for explosive synchronization develop in human brain networks with the onset of anesthetic-induced unconsciousness. Front Comput Neurosci 2016. 10.3389/fncom.2016.00001
相位同步的估计
- Lachaux J-P 等. Measuring phase synchrony in brain signals. Hum Brain Mapp 1999. 10.1002/(SICI)1097-0193(1999)8:4<194::AID-HBM4>3.0.CO;2-C
- Nolte G 等. Identifying true brain interaction from EEG data using the imaginary part of coherency. Clin Neurophysiol 2004. 10.1016/j.clinph.2004.04.029
- Stam CJ, Nolte G, Daffertshofer A. Phase lag index: assessment of functional connectivity from multi channel EEG and MEG with diminished bias from common sources. Hum Brain Mapp 2007. 10.1002/hbm.20346
- Vinck M 等. The pairwise phase consistency: a bias-free measure of rhythmic neuronal synchronization. NeuroImage 2010. 10.1016/j.neuroimage.2010.01.073
- Vinck M 等. An improved index of phase-synchronization for electrophysiological data in the presence of volume-conduction, noise and sample-size bias. NeuroImage 2011. 10.1016/j.neuroimage.2011.01.055
- Bastos AM, Schoffelen J-M. A tutorial review of functional connectivity analysis methods and their interpretational pitfalls. Front Syst Neurosci 2016. 10.3389/fnsys.2015.00175
生物医学实例
- Michaels DC, Matyas EP, Jalife J. Mechanisms of sinoatrial pacemaker synchronization: a new hypothesis. Circ Res 1987. 10.1161/01.RES.61.5.704
- Welsh DK 等. Individual neurons dissociated from rat suprachiasmatic nucleus express independently phased circadian firing rhythms. Neuron 1995. 10.1016/0896-6273(95)90214-7
- Liu C, Weaver DR, Strogatz SH, Reppert SM. Cellular construction of a circadian clock: period determination in the suprachiasmatic nuclei. Cell 1997. 10.1016/S0092-8674(00)80473-0
- Aton SJ, Herzog ED. Come together, right…now: synchronization of rhythms in a mammalian circadian clock. Neuron 2005. 10.1016/j.neuron.2005.11.001
- Schindler K 等. Assessing seizure dynamics by analysing the correlation structure of multichannel intracranial EEG. Brain 2007. 10.1093/brain/awl304
- Jiruska P 等. Synchronization and desynchronization in epilepsy: controversies and hypotheses. J Physiol 2013. 10.1113/jphysiol.2012.239590
- Jirsa VK 等. On the nature of seizure dynamics. Brain 2014. 10.1093/brain/awu133
- Hammond C, Bergman H, Brown P. Pathological synchronization in Parkinson’s disease: networks, models and treatments. Trends Neurosci 2007. 10.1016/j.tins.2007.05.004
- Tass PA. A model of desynchronizing deep brain stimulation with a demand-controlled coordinated reset of neural subpopulations. Biol Cybern 2003. 10.1007/s00422-003-0425-7
- Little S 等. Adaptive deep brain stimulation in advanced Parkinson disease. Ann Neurol 2013. 10.1002/ana.23951
- Rattenborg NC, Amlaner CJ, Lima SL. Behavioral, neurophysiological and evolutionary perspectives on unihemispheric sleep. Neurosci Biobehav Rev 2000. 10.1016/S0149-7634(00)00039-7
Data & tools相关数据与软件
Further延伸资源
| 类型 | 资源 | 说明 |
|---|---|---|
| 中文视频 | Veritasium 真理元素:同步之秘【官方双语】(B 站) | 萤火虫、节拍器、千禧桥,引出 Kuramoto 模型;正片约 20 分钟 |
| 交互演示 | Complexity Explorables:Ride my Kuramotocycle!(链接) | 调节耦合强度与频率分布,实时观察序参量与同步相变 |
| 开放教材 | Sayama《Introduction to the Modeling and Analysis of Complex Systems》第 18 章(LibreTexts) | 拉普拉斯谱与可同步性(18.3 节),附 Python 代码;CC BY-NC-SA |
| 开放教材 | Barabási《Network Science》第 10 章 Spreading Phenomena(链接) | 该书没有同步专章;第 10 章的异质平均场与 阈值可与网络拓扑与同步阈值对照 |
| 论文 | Strogatz 2000, From Kuramoto to Crawford, Physica D(DOI) | 见核心文献,Kuramoto 模型最好的教学性综述 |
| 综述 | Acebrón 等 2005, The Kuramoto model, Rev Mod Phys(DOI) | 完整的数学综述,第 2 节平均场推导可对照Kuramoto 模型与序参量 |
| 综述 | Arenas 等 2008, Synchronization in complex networks, Physics Reports(DOI) | 网络同步的标准参考,见核心文献 |
| 综述 | Rodrigues 等 2016, The Kuramoto model in complex networks, Physics Reports(arXiv:1511.07139) | 开放预印本,覆盖爆发式同步、噪声与惯性、Ott–Antonsen 约化 |
| 综述 | Boccaletti 等 2006, Complex networks: Structure and dynamics, Physics Reports(DOI) | 结构与动力学的综合综述,同步部分对 MSF 类型有清晰归纳 |
| 科普书 | Strogatz《Sync: The Emerging Science of Spontaneous Order》(2003) | 从萤火虫、起搏细胞、生物钟到约瑟夫森结的非技术性介绍,适合建立整体图景 |
| 软件 | The Virtual Brain(thevirtualbrain.org) | 开源全脑建模平台,内置多种神经质量模型与连接组 |
| 软件 | MNE-Python Connectivity(mne-connectivity) | EEG/MEG 的 PLV、PLI、wPLI、相干等指标的标准实现 |
| 论文(生物医学) | Jiruska 等 2013, Synchronization and desynchronization in epilepsy, J Physiol(DOI) | 癫痫中同步与去同步的争议与假说,对应生物医学应用 |
| 英文视频 | LMU Physics of Life:The Kuramoto Model & Synchronization Transition(YouTube) | 约 50 分钟的大学讲座,完整推导同步相变,适合想跟一遍数学的读者;需境外网络 |
提示:Barabási《Network Science》在线版需加载境外脚本,在中国大陆可能无法正常显示;标注“需境外网络”的为 YouTube 资源。
Open questions开放问题
- 在你的研究方向中(如脑电、心电、细胞钙振荡、生物钟、基因表达振荡),有没有可以看作“耦合振荡器”的系统?其中“耦合”由什么物理或生物机制实现?应该用什么指标度量同步?
- 深部脑刺激的一种思路是“去同步化”。请用同步动力学的语言(耦合强度、序参量、网络结构)描述:若要用最少的刺激点打破一个病理性同步簇,应选择网络中的哪些节点?这个问题和网络可控性与稳定性中的网络控制问题有什么联系?
- 某研究报告患者组的 EEG α 频段 PLV 网络“全局效率升高”。在接受这一结论之前,你会检查哪些方法学因素(数据长度、参考电极、容积传导、指标选择、信噪比差异)?换用 wPLI 后结论若消失,说明了什么?
- 全脑模型中,若最符合数据的全局耦合强度在患者组更低,这能否解释为“患者的结构连接更弱”?还有哪些模型参数或数据差异可以产生同样的结果?